Охота и собирательство во влажном тропическом лесу: возможно ли это?
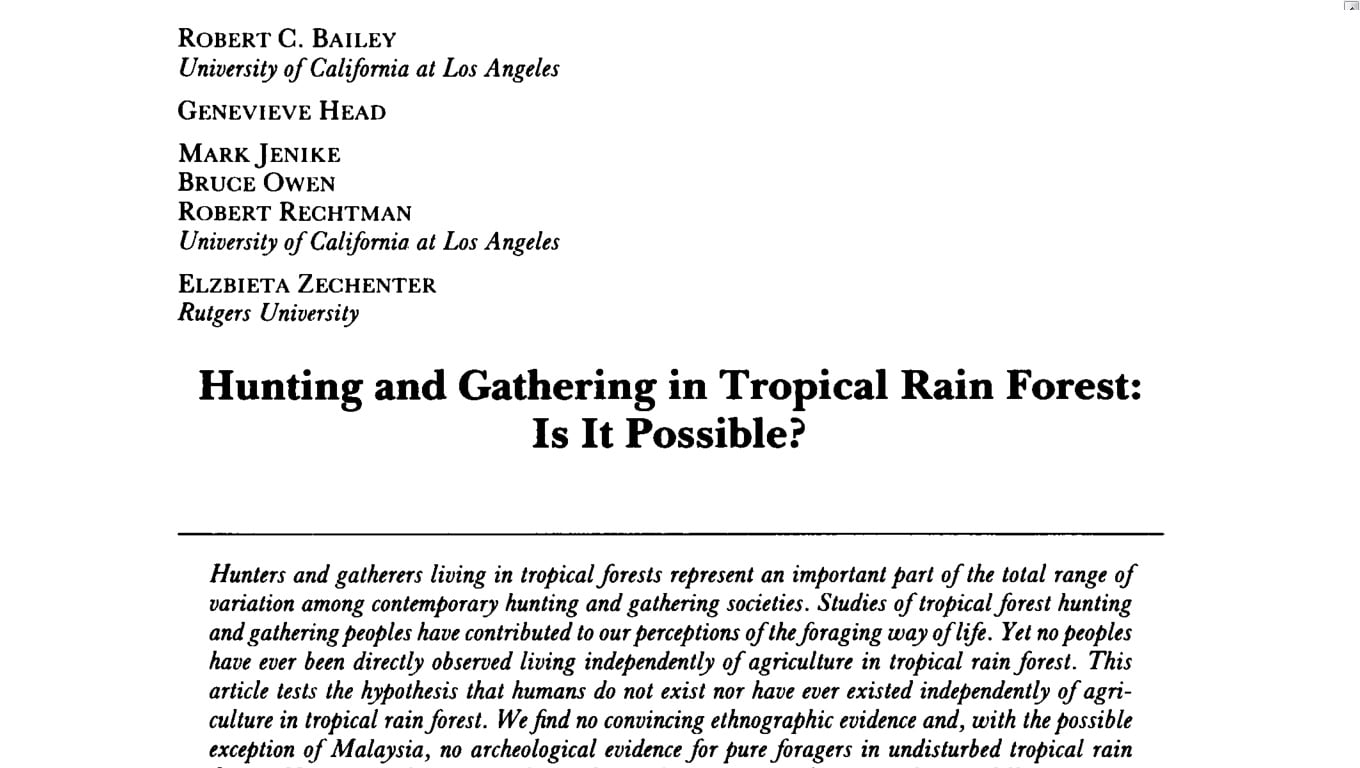
(Роберт Бейли и др. (1989) - Bailey, R.C., Head, G., Jenike, M., Owen, B., Rechtman, B., et al. (1989). Hunting and Gathering in Tropical Rain Forest: Is It Possible? – American Anthropologist. New Series, Vol. 91, No. 1, pp. 59-82)
Охотники и собиратели, обитающие во влажных тропических лесах, представляют собой важную часть всего спектра вариативности современных обществ, ведущих присваивающее хозяйство. Исследования народов, живущих охотой и собирательством во влажных тропических лесах, внесли значительный вклад в наши представления о таком образе жизни. Тем не менее ни один народ так и не был документально зафиксирован как живущий независимо от земледелия во влажном тропическом лесу. В настоящей статье проверяется гипотеза о том, что люди не существуют и никогда не существовали во влажном тропическом лесу независимо от земледелия. Мы не обнаруживаем убедительных этнографических данных и, за возможным исключением Малайзии, никаких археологических свидетельств существования чистых охотников-собирателей в ненарушенных влажных тропических лесах. Отсутствие свидетельств не может считаться окончательным доказательством, однако оно указывает, что нам необходимо тщательно пересмотреть общепринятые допущения относительно недавней истории обитателей тропических лесов, адаптивных возможностей доземледельческого человечества, географического и экологического диапазона гоминид, а также характера и последствий действия факторов отбора, влияющих на человека в тёплых и влажных средах. Главная цель данной статьи — стимулировать дальнейшие экологические и археологические исследования в тех районах влажных тропических лесов мира, которые до сих пор оставались без должного внимания.
Антропологи давно исходят из того, что вплоть до неолита практически все области земного шара, за исключением немногих, были заселены людьми, жившими охотой и собирательством (см., напр.: Hassan 1981; Lee and DeVore 1968). Среды, осваивавшиеся доземледельческим населением, охватывали чрезвычайно широкий спектр местообитаний — от северных бореальных лесов Северной Америки и Азии до влажных тропических лесов Африки и Южной Азии. С одомашниванием растений и животных рост плотности населения и распространение новых технологий привели к сокращению численности и географического ареала охотников и собирателей, так что сегодня они сохраняются лишь в тех районах, которые по большей части непригодны для крупномасштабного земледелия и скотоводства. К таким районам обычно относятся засушливые и пустынные местообитания, холодные северные области или влажные тропические леса.
Антропологи и другие исследователи сегодня изучают немногих сохранившихся охотников и собирателей отчасти для того, чтобы выявить закономерности вариативности в способах жизнеобеспечения и социальной организации. В конечном счёте исследования этих современных народов могут расширить наше понимание универсальных процессов, которые сформировали поведение и морфологию нашего вида и обусловили внутривидовую изменчивость.
Охотники и собиратели, населяющие влажные тропические леса, представляют собой значительную часть всего спектра вариативности современных обществ, ведущих присваивающее хозяйство. Если, как широко принято считать, охотники и собиратели некогда были распространены в самых разных средах по всему миру, то изучение немногих сохранившихся лесных охотников-собирателей может оказаться важным для понимания общих закономерностей вариативности. Исследования таких обществ уже оказали заметное влияние на наши общие представления о присваивающем образе жизни (см., напр.: Eder 1984; Estioko-Griffin and Griffin 1981; Hill and Hawkes 1983; Holmberg 1950; Peterson 1981; Turnbull 1965a, 1965b). Широко признано, что изучение охотников-собирателей влажных тропических лесов важно для реконструкции образа жизни людей, живших до одомашнивания растений и животных (Cavalli-Sforza 1986; Hill 1982; Turnbull 1968; Williams 1974). Это признаётся, хотя многие исследователи хорошо осознают, что известные народы, ведущие присваивающее хозяйство в тропических областях, на протяжении очень долгого времени находились в контакте с земледельцами и в той или иной степени зависели от одомашненных растений и животных (см., напр.: Bahuchet and Guillaume 1982; Bailey and Peacock 1988; Endicott 1984; R. G. Fox 1969; Hart and Hart 1986; Headland 1985; Hoffman 1984; Hutterer 1983; Lathrap 1968; Peterson 1981; Rambo 1985; Schrire 1984). Стало ясно, что модели доземледельческой жизни, основанные на данных о современных народах, обитающих во влажных тропических лесах, должны быть, как минимум, скорректированы с учётом последствий зависимости от одомашненных пищевых ресурсов и контактов с соседями-земледельцами.
Если до сих пор существует определённое неприятие идеи о том, что в настоящее время нет народов, живущих независимо от земледелия во влажном тропическом лесу — многим хотелось бы верить, что подлинные охотники и собиратели всё ещё существуют в отдалённых районах тропических лесов, — то возможность того, что никогда не существовало людей, способных прокормиться в тропическом лесу независимо от одомашненных растительных или животных ресурсов, почти не осознаётся. Между тем это важная гипотеза, которую необходимо рассмотреть, поскольку, если люди смогли жить в тропических лесах лишь после появления земледелия, требуется пересмотреть допущение о том, что охотники-собиратели некогда были широко расселены и адаптированы к разнообразным местообитаниям по всему миру.
Настоящая статья, таким образом, посвящена проверке нулевой гипотезы о том, что люди никогда не жили во влажном тропическом лесу независимо от одомашненных растений и животных. Сначала мы рассмотрим распределение и обилие ресурсов, доступных для использования человеком в экосистемах влажных тропических лесов. Затем мы попытаемся проверить данную гипотезу, во-первых, путём поиска современных народов, ведущих присваивающее хозяйство во влажных тропических лесах без опоры на культурные пищевые ресурсы — собственные или соседних народов, и, во-вторых, путём поиска в археологической летописи бесспорных свидетельств обитания доземледельческих гоминид в условиях влажного тропического леса.
СРЕДЫ ВЛАЖНЫХ ТРОПИЧЕСКИХ ЛЕСОВ
Для целей настоящей статьи мы определяем влажный тропический лес как вечнозелёный или смешанный вечнозелёный и листопадный лес, расположенный в пределах тропиков (примерно между 23°27′ с. ш. и 23°27′ ю. ш.), где минимальные температуры не опускаются ниже нуля, а среднегодовое количество осадков превышает 1000 мм. Учитывая, что в указанных пределах существует огромное разнообразие типов влажных тропических лесов, каждый из которых обладает собственными особенностями и закономерностями продуктивности, мы приводим здесь общую сводку данных об обилии и распределении ресурсов, доступных для использования человеком во влажных тропических лесах.
Влажные тропические леса являются наиболее продуктивными наземными экосистемами на Земле. Они обладают наивысшими показателями валовой и чистой первичной продуктивности, причём последняя в среднем составляет 23 тонны на гектар в год (Golley 1975:109). Высокий уровень солнечной энергии в сочетании с достаточно равномерными температурами, высокой влажностью и относительно обильными осадками обеспечивает превосходные климатические условия для роста растений. Кроме того, влажные тропические леса чрезвычайно эффективно и быстро обеспечивают круговорот большинства питательных веществ, с минимальными потерями элементов за пределы экосистемы (Golley 1975; Stark 1971). В целом влажные тропические леса мира обладают наибольшей биомассой, наивысшей продуктивностью и наибольшим видовым разнообразием среди всех наземных экосистем (Sponsel 1986). Однако большая часть энергии во влажном тропическом лесу заключена в несъедобной древесной ткани. Острая конкуренция за свет и пространство на земле благоприятствует растениям, которые направляют бо́льшую часть своей энергии на формирование опорных структур и поддержание жизнедеятельности (Golley 1975). Лишь 2 % биомассы в лесах центральной Амазонии приходится на листья (Fittkau and Klinge 1973), а растения в климаксных влажных тропических лесах нередко накапливают в листьях токсины, что препятствует их поеданию насекомыми и животными (Janzen 1975). Очень мало энергии направляется в репродуктивные органы — цветки, плоды и семена, — то есть именно в те части, которые обычно наиболее пригодны в пищу для охотников-собирателей и многих видов их добычи. Подавляющая часть энергии, доступной для потребления человеком, находится над землёй, зачастую высоко в кронах, куда трудно добраться. Более того, в большинстве влажных тропических лесов виды со съедобными частями широко рассредоточены как в пространстве, так и во времени; затраты на перемещение между источниками растительной пищи, как правило, высоки. В сочетании с трудностями переработки семян и плодов, часто покрытых твёрдой защитной оболочкой, или клубней, которые трудно выкапывать и подготавливать, это делает добычу и обработку растительной пищи во влажных тропических лесах относительно затратной.
Вблизи экватора в целом и во влажных тропических лесах в частности сезонность осадков выражена слабее, чем в других районах мира (Ricklefs 1973). Тем не менее во влажных тропических лесах наблюдаются значительные сезонные колебания количества осадков, и, вопреки распространённому мнению, эти колебания обусловливают выраженную сезонность продуктивности на всех трофических уровнях (Eisenberg 1983; Heatwole 1983). Например, на всей территории Центральной Африки в некоторых местностях от одного до четырёх месяцев выпадает менее 100 мм осадков, а бездождевые периоды длятся десять и более дней (Richards 1973). В большинстве влажных тропических лесов есть хотя бы один период в году, когда запасы растительной пищи истощаются (Eisenberg 1983). Колебания в наступлении и продолжительности сухого сезона могут вызывать серьёзные нарушения годового цикла многих биологических систем, приводя к значительному снижению доступности пищи; популяции животных могут сильно колебаться из-за непредсказуемых изменений в кормовой базе. Животные могут мигрировать из пострадавшего района (Eisenberg 1983), а периоды массового голода, вызванного нехваткой плодов, наблюдались, например, в Панаме (Leigh 1975, цит. по: Sponsel 1986). Эта непредсказуемость и изменчивость пищевых ресурсов для охотников-собирателей во влажных тропических лесах (см., напр.: Bailey and Peacock 1988; Hart and Hart 1986; Meggers 1973) ещё больше снижает способность этих лесов прокормить охотников и собирателей.
Углеводы зачастую являются лимитирующим ресурсом для человеческих популяций во влажных тропических лесах (Headland 1987; Hutterer 1983; Meggers 1973; Milton 1984; Sponsel 1986), однако источники белка и богатых калориями жиров могут быть столь же дефицитными в определённые периоды или в определённых местах. В большинстве влажных тропических лесов разнообразие животных, потенциально важных источников белка и жира, велико, но их биомасса невелика (Bourliere 1973; Eisenberg 1983), а распределение особей может быть неравномерным. Кроме того, многие животные, на которых охотится человек, ведут древесный или ночной образ жизни, и все они мельче своих сородичей, обитающих в более открытых местообитаниях. Нередко они имеют покровительственную окраску и ведут скрытный образ жизни. Все эти особенности действуют против человека как хищника, охотящегося на лесных млекопитающих (Sponsel 1986).
Доступность животного белка для потребления человеком во влажных тропических лесах широко обсуждалась (см., напр.: Beckerman 1979; Chagnon and Hames 1979; Gross 1975; Harris 1984), однако мясо как источник калорий не привлекало большого внимания (ср.: Hart and Hart 1986). Мясо могло бы стать значимым источником калорий для человека во влажных тропических лесах, где источники углеводов могут быть скудны. Однако, за редким исключением (напр.: Hill and Hawkes 1983:158), большинство диких животных крайне тощи и содержат мало калорийного жира. Постное мясо — неэффективный источник энергии; при длительном употреблении оно может вызывать физиологическое перенапряжение (Speth and Spielman 1983). Сезон, когда животные наиболее тощи, совпадает с сезоном, когда другие лесные пищевые ресурсы наименее обильны (Hart and Hart 1986). Следовательно, животные во влажных тропических лесах вряд ли могут служить адекватной заменой углеводам в качестве источника калорий.
Если влажные тропические леса сегодня кажутся способными прокормить охотников-собирателей, это может быть связано с тем, что длительное присутствие человека в большинстве районов привело к повсеместному нарушению некогда климаксных местообитаний. Многие растения, которые в настоящее время обычно используются человеком в районах влажных тропических лесов, возможно, не встречались в таком обилии до появления подсечно-огневого земледелия в лесу. Люди расчищают участки влажных тропических лесов под земледелие уже не менее 4000 лет, а вероятно, и значительно дольше (David 1982; Ehret 1982; Hutterer 1983; Meggers 1973; Sponsel 1986). Столь продолжительное присутствие земледельцев во влажных тропических лесах не только привело к появлению в лесу новых видов растений, но и создало мозаику климаксных и множества сукцессионных стадий растительности (Flenley 1979), что увеличивает долю видов растений, обычно потребляемых охотниками-собирателями. Многие растения, ныне потребляемые жителями тропических лесов, в том числе ямс и многие орехи, сильно зависят от света и прежде встречались лишь на ветровалах или по берегам ручьёв. Расчистка леса создала новые экотоны внутри обширных лесных массивов мира, создав благоприятные условия для растений, которые направляют меньше энергии на поддержание и защиту и больше — на рост и размножение. Вторичные сообщества, формирующиеся после расчистки леса, часто содержат одичавшие культурные растения, такие как ямс, пальмы и плодовые деревья, а также пионерные виды растений, которые в климаксном влажном тропическом лесу редки или отсутствуют (Hallsworth 1982; Hart and Hart 1986). Такие растения распространились естественным путём, но их присутствие в лесу зависит от условий, сформированных земледельческой деятельностью.
Таким образом, ресурсы в ненарушенных влажных тропических лесах могут быть настолько скудными, изменчивыми и рассредоточенными, что не способны поддерживать жизнеспособные популяции охотников и собирателей. Для проверки этой гипотезы мы провели поиск в этнографической и археологической литературе подтверждённых сведений об охотниках и собирателях, живущих независимо от земледелия во влажном тропическом лесу.
СВИДЕТЕЛЬСТВА О СОВРЕМЕННЫХ ОХОТНИКАХ И СОБИРАТЕЛЯХ ВО ВЛАЖНЫХ ТРОПИЧЕСКИХ ЛЕСАХ
Пигмеи — это низкорослые народы, расселённые разрозненно по всей области влажных тропических лесов бассейна реки Конго (Заир). Сегодня многие группы пигмеев практикуют подсечно-огневое земледелие и периодически работают на коммерческих плантациях или на крупных лесозаготовках ради денежного дохода (Bailey 1982; Cavalli-Sforza 1986). Многие другие живут охотой и собирательством, добывая мясо, мёд и другие лесные ресурсы, которые потребляют сами или обменивают на продукты соседних земледельцев, говорящих на языках банту и суданских языках. В обмен на лесные ресурсы они получают маниок, рис, бананы и другие культурные продукты, а также материальные предметы — одежду, горшки, топоры и другие металлические изделия. В описаниях пигмеев, восходящих к Швайнфурту (1874) и первым этнографическим отчётам Шебесты (1936), уже отмечались давние контакты между пигмеями и земледельцами.
Практически все описания пигмеев следуют традиционному представлению о том, что пигмеи являются исконными обитателями африканского влажного тропического леса (см., напр.: Cavalli-Sforza 1972, 1986; Hallet 1973; Harako 1976; Hiernaux 1977; Mann et al. 1962; Tanno 1981; Turnbull 1961, 1965a). Широко распространено мнение, что пигмеи существовали исключительно за счёт охоты и собирательства в лесах Центральной Африки вплоть до примерно 2000–4000 лет назад, когда народы, говорящие на языках банту, принесли подсечно-огневое земледелие (Ehret 1982; Saxon 1982).
Недавние исследования моделей жизнеобеспечения пигмеев мбути в лесу Итури на северо-востоке Заира и экологии влажного тропического леса позволили по-новому взглянуть на проблему (Bailey and Peacock 1988; Hart and Hart 1986). Сегодня мбути получают приблизительно 65 % своих калорий из продуктов, выращиваемых соседними оседлыми земледельцами (Bailey 1985; Bailey and Peacock 1988; Ichikawa 1983). Хотя в короткие периоды в определённое время года они способны добывать почти всю пищу из леса, бо́льшую часть года мбути зависят от культурных продуктов как основного источника калорий. При их нынешних технологиях и знаниях о лесе мбути более не рассматривают существование исключительно за счёт лесных пищевых ресурсов как возможный вариант (Bailey and Peacock 1988). Харт и Харт (1986) обнаружили, что вплоть до пяти месяцев в году ни один из калорийно значимых лесных плодов и семян недоступен для охотников-собирателей в районе Итури. Кроме того, самые распространённые объекты охоты мбути содержат очень мало жира, особенно в то время года, когда растительная пища скудна. Поэтому Харты заключают, что «маловероятно, чтобы охотники-собиратели могли жить независимо во внутренних районах леса с их неустойчивой ресурсной базой» и что Итури «по существу был необитаем до недавнего времени» (1986:29).
Сегодня все группы пигмеев по всей Центральной Африке зависят от культурных продуктов, составляющих значительную долю их рациона. Многие добывают земледельческие продукты так же, как мбути, — охотясь и собирая дикие лесные ресурсы и обменивая их, наряду со своим трудом, на продукты оседлых производителей пищи. Такой способ жизнеобеспечения, называемый специализированной охотой и собирательством, является распространённым образом жизни, который практикуют многие народы, живущие во влажных тропических лесах по всему миру.
Возможно, до появления земледелия пигмеи не были расселены по всему бассейну Конго, как сегодня, а осваивали более продуктивный и устойчивый экотон леса и саванны на краю бассейна. Внутри самого леса ресурсы, особенно источники углеводов и жиров, могли быть слишком скудны, чтобы прокормить охотников-собирателей на протяжении всего года. Когда земледельцы, практикующие переложное земледелие, продвинулись вглубь бассейна, они создали концентрированные источники углеводов в виде культурных растений и сформировали мозаику вторичных и первичных местообитаний, ставших более продуктивными, чем исходный влажный тропический лес. Этот процесс фактически распространил экотон внутрь бассейна Конго и вполне мог способствовать последующему расселению пигмеев от окраин леса в центральные части бассейна.
Индия, Шри-Ланка и Андаманские острова
В Индии существует множество групп охотников и собирателей, которые хотя бы частично обеспечивают своё существование за счёт эксплуатации лесных ресурсов. Среди них куки и нага на северо-востоке Индии; бирхор, холл-кхария, корва, джуанг и холл-мария на плато центральной Индии; ченчу, еркула, боя, беста, джалари и янади в штате Андхра-Прадеш; кадар, мала-пантарам, арандар и курумба в штате Керала; палиян и курумба в штате Тамилнад; онге, джарава, большие андаманцы, шомпен и сентинельцы на Андаманских и Никобарских островах; а также ведды на Цейлоне (Gardner 1965; Heine-Geldern 1958; Murdock 1968; Murty 1981).
Здесь нет возможности рассмотреть все возможные случаи охоты и собирательства во влажных тропических лесах Индии. Наш поиск в литературе не выявил ни одного такого случая; все группы поддерживают обширные торговые связи или иные экономические отношения со своими земледельческими или коммерческими соседями. В целом все индийские группы охотников и собирателей обладают следующими чертами: (1) они всегда расположены вблизи деревень земледельческих племён или индуистских каст; (2) они ведут обмен с земледельческими и кастовыми общинами, с которыми связаны; и (3) они являются узкоспециализированными освоителями маргинальных территорий, откуда снабжают остальное общество желаемыми товарами. Исторические документы подтверждают такую картину и указывают, что индийские группы, ведущие присваивающее хозяйство, могли существовать в качестве специализированных сборщиков лесных ресурсов на протяжении длительного времени (R. G. Fox 1969). Более того, индийские охотники и собиратели живут по большей части в деградировавших вторичных лесах, подвергшихся интенсивной чрезмерной эксплуатации.
Р. Г. Фокс (1969) убедительно доказал, что все группы в Индии, которые могли бы считаться охотниками и собирателями, относятся к тому, что он называет «профессиональными примитивами». Изучив литературу об индийских охотниках-собирателях, мы не смогли найти ни одного примера, опровергающего его точку зрения. Фактически подход Фокса применим и за пределами Индии — на Шри-Ланке, в том числе к другим группам, которых называют охотниками и собирателями, в особенности к веддам Цейлона, чьи экономические контакты с земледельцами упоминаются уже в XVII веке (Knox 1681, цит. по: Seligmann and Seligmann 1911:5–7).
Народы, населяющие Андаманские острова, заслуживают более пристального внимания. Считается, что Андаманские острова были заселены исключительно охотниками и собирателями вплоть до 1800-х годов. С тех пор произошло резкое сокращение численности коренного населения и вытеснение его с прибрежных районов во внутренние части островов (Cipriani 1966; Das 1982; Heine-Geldern 1958; Lal 1977).
Со времён Мэна, в 1880-х годах, все исследователи, работавшие на Андаманских островах, отмечали значение морских ресурсов для жизнеобеспечения как тех, кто живёт на побережье, так и тех, кто обитает во внутренних районах островов (Cipriani 1966; Dutta 1978; Man 1975; Pandit 1976; Radcliffe-Brown 1933), что подразумевает, что андаманцы обеспечивали своё существование за счёт ресурсов богатых прибрежных вод, а не влажного тропического леса.
Чиприани пришёл к выводу, что леса дают мёд, клубни, ямс и немного плодов, наиболее важным из которых является дикий джекфрут, тогда как прибрежные ресурсы были обильны круглый год и включали в себя морских черепах и их легко добываемые яйца, рыбу, моллюсков и птиц. Он также упомянул, что появление собак на островах позволило островитянам сделать охоту на одичавших свиней более успешной, проникших в леса. Джарава, например, которые были вытеснены во внутренние районы недавними переселенцами, по-видимому, живут за счёт диких свиней, добываемых с помощью охотничьих собак, а также морских ресурсов, собираемых во время выходов на побережье (Cipriani 1966:78).
Юго-Восточная Азия, Филиппины и Австралия
В Юго-Восточной Азии существует большое число групп, которые для обеспечения своего существования частично зависят от охоты и собирательства. Среди них семанг и батек на Малайском полуострове, пунан/пенан и родственные группы на Борнео, кубу на Суматре и тоала на Целебесе (Bellwood 1979; Endicott 1982; Lebar 1972; Hoffman 1984; Rambo 1985). На Филиппинах это батак (Eder 1978), ата и несколько групп агта (Griffin 1984; Headland 1985; Peterson 1978). Несколько групп также обитает вблизи северо-восточного побережья Австралии (Tindale 1974).
Согласно традиционным представлениям, все эти охотники-собиратели являются остатками некогда широко распространённых палеолитических охотничье-собирательских популяций, осваивавших обширные площади влажных тропических лесов на территории Сунда и Сахул (см., напр.: Bellwood 1979; R. G. Fox 1969; Rambo 1985). Сегодня все такие группы выступают в роли специализированных охотников и собирателей, или «профессиональных примитивов» (R. G. Fox 1969; Rambo 1985), собирающих лесные продукты для обмена с деревенскими земледельцами и для собственного потребления. Как утверждает Рамбо, «большинство, если не все, современные охотники и собиратели в Юго-Восточной Азии… вовлечены в такие торговые отношения до такой степени, что сомнительно, смогли бы они выжить, если бы торговля прекратилась» (1985:31).
Говоря о пунан, Нидхем предположил, что «им необходимо торговать с оседлыми народами… чтобы оставаться кочевниками» (1972:177–178), тогда как Хоффман утверждает, что пунан представляют собой деградировавшую группу земледельцев, которые «возможно, даже стали кочевниками ради торговли» (1984:142).
Хедленд, не сумевший обнаружить в Юго-Восточной Азии ни одной группы, которая в настоящее время жила бы независимо от земледелия и торговли, указывает на ряд характеристик, общих не только для всех групп, ведущих присваивающее хозяйство в этой части мира, но и для многих других. Он называет такие группы «коммерческими охотниками-собирателями» и выделяет, среди прочего, следующие черты: «симбиотические отношения с внешними группами; спорадическое, нерегулярное земледелие…; большая часть растительной пищи является культурной, а не дикой; и неспособность этих групп стать успешными земледельцами» (Headland 1985:545). Хедленд, как и Рамбо (1985), Хоффман (1984) и Эндикотт (1984), утверждал, что современные группы, ведущие присваивающее хозяйство по всей Юго-Восточной Азии, на протяжении многих столетий либо спорадически занимались земледелием, либо поддерживали обширные торговые связи с земледельцами.
Народ джабукай, обитавший на небольшом участке влажного тропического леса на плато Атертон в восточной Австралии, помимо лесных ресурсов, собирал пищу в кустарниковых зарослях на опушках леса и поддерживал торговые связи с народами на востоке вдоль побережья (Tindale 1974:123). Далла жили в лесах к северу от Брисбена; они и их гости из травянистых равнин и побережья использовали ресурсы обширных зарослей буньи, а к югу от 25° ю. ш. находились уже за пределами тропиков (Tindale 1974:124–125).
Наиболее распространённой, если не всеобщей, адаптацией человека к жизни во влажных тропических лесах Нового Света является сочетание земледелия с охотой и собирательством (Hames and Vickers 1983; Lathrap 1968; Sponsel 1986; Steward 1963). Однако Мердок (1967) упоминает несколько групп охотников и собирателей в Южной и Центральной Америке, которые, по имеющимся сведениям, не занимаются земледелием. Мы считаем, что существует восемь групп, живущих в лесу и заслуживающих тщательного рассмотрения: параухано в Панаме; аче в Парагвае; акурио в Суринаме; а также ботокудо, авейкома, маку, акурио, сирионо и хета в Бразилии.
Параухано живут не исключительно за счёт лесных ресурсов, а скорее за счёт рыбы из крупного озера, на берегу которого они обитают (Wilbert 1959:82). Присутствие в начале XX века в их языке исконных слов для обозначения таких культурных растений, как бананы, маис, юка и бобы, позволяет предположить, что они также занимаются земледелием уже давно (Jahn 1914).
Название «ботокудо» также использовалось для авейкома и хета, о которых речь пойдёт ниже. Метра приводит семь дополнительных названий для ботокудо. Хотя Метра утверждает, что ботокудо стали земледельцами лишь в прошлом столетии (1963b:531–532), существуют упоминания о их контактах с португальцами в XVI веке и о союзе с несколькими земледельческими племенами в XVII веке (Metraux 1963b:531).
Авейкома — это группа каинганг (или кайнганг), которых также называют ботокудо штата Санта-Катарина в Бразилии. Генри, изучавший авейкома в резервации в 1932–1934 годах, сообщает, что эти каинганг были вытеснены врагами из саванн на западе и вынуждены стать лесными охотниками-собирателями около 300 лет назад. В 1914 году они были «умиротворены» и стали земледельцами (Henry 1941:3). Метра признаёт, что все каинганг возделывали пищевые растения, и все авейкома помнили время, когда они сами занимались земледелием (Metraux 1963a:450). Это указывает, что если авейкома когда-либо и жили без одомашненных продуктов до 1914 года, то, вероятно, лишь в течение ограниченного периода и в районе, сильно нарушенном ими самими или другими каинганг-земледельцами в прошлом.
Аче в восточном Парагвае — народ, ведущий присваивающее хозяйство, который обитает у самой границы тропиков, где температуры несколько дней в году опускаются ниже нуля, подобно авейкома (Hill 1983:67). Аче в последнее время изучались Хиллом, Хоукс, Капланом и Уртадо (Hill 1983; Hill and Hawkes 1983; Hurtado et al. 1985), а также Кластром (1972), который называет их гуаяки. В 1944 году Метра и Бальдус (1963:436) писали, что «современные гуаяки полностью зависят от собирательства, охоты и рыболовства; по данным наиболее авторитетных источников, они не знают никакой формы земледелия». Хилл (1983) описывает, как аче были «контактированы» в конце 1970-х годов и с тех пор поселились в лагерях и на миссионерских станциях, где выращивают рис и другие пищевые культуры.
До этого времени Хилл считает аче полноценными охотниками-собирателями. Однако Лосано утверждает, что «гуаяки сеют маис, но их посевы невелики, потому что они съедают зелёные початки, прежде чем те созреют» (Lozano 1873–74:1:415, цит. по: Metraux and Baldus 1963:436). Район, в котором обитают аче, очевидно, был существенно изменён в результате хозяйственной деятельности человека и интродукции одичавших видов. Например, в лесу много апельсиновых деревьев, и аче едят их плоды; мёд медоносной пчелы (Apis mellifera) составляет до 44 % калорий, потребляемых во время собирательских выходов (Hill 1983:83). И апельсины, и Apis mellifera были завезены в лес после прибытия европейцев в Южную Америку.
В некоторых участках леса наблюдается густая низкая растительность с множеством вьющихся растений и лиан, что указывает на недавнюю расчистку. Некоторые из используемых растений являются светолюбивыми и более характерны для сукцессионных местообитаний, чем для климаксного влажного тропического леса. Несомненно, несколько групп земледельцев осваивали этот район на протяжении сотен лет (Hill 1983).
Спонсел (1986) упоминает маку и акурио как охотников и собирателей, которые не занимаются земледелием. Однако маку поддерживают обширные торговые связи со своими земледельческими соседями, говорящими на туканских языках (Sponsel 1986:75; Milton 1984), а другие исследователи указывали, что они практикуют «зачаточное земледелие» (Jackson 1975:312–313). Клос предполагает, что акурио в Суринаме были подсечно-огневыми земледельцами приблизительно до 1880 года, когда в результате конфликтов с другими группами они были вынуждены перейти к малоэффективному кочевому лесному образу жизни (Kloos 1977:7, 19). Когда миссионеры установили с ними контакт в 1968 году, их оставалось лишь 60 человек и, возможно, они имели связи с земледельческими группами по ту сторону границы в Бразилии.
Сирионо иногда упоминаются как охотники и собиратели (Isaac 1977). Однако в своей первоначальной этнографии Хольмберг (1950) ясно указывает, что сирионо возделывают маис, маниок, батат, папайю и другие пищевые культуры; он, по-видимому, преуменьшил их значение, поскольку, по его меркам, огороды были плохо ухожены (Isaac 1977:138; Stearman 1984).
Наконец, Фернандеш (1959) сообщает о ныне исчезнувшей группе под названием хета (или шета), которая обитала в штате Парана на юге Бразилии. Этот народ также называли ботокудо, сета и хета (Kozak et al. 1979:355). По словам Фернандеша, хета «не имеют никакого представления о земледелии» (Fernandes 1959:24). Однако большая часть сведений о хета исходит от Козака, который неоднократно посещал хета вскоре после первого зафиксированного контакта в конце 1954 года (Kozak et al. 1979). Согласно Козаку и его коллегам (1979:366), хета жили в крупных поселениях и возделывали культуры вдоль реки Иваи вплоть до 1940-х годов, когда их резко сократившееся население намеренно перешло к кочевому образу жизни, чтобы избежать контактов. Подобно аче, хета жили на границе тропиков; средняя температура в их районе составляла около 15 °C, и они иногда испытывали заморозки (Kozak et al. 1979:366–367). Судя по имеющимся данным, по крайней мере некоторые хета действительно прожили несколько лет, не занимаясь земледелием. Однако, как и в случае с авейкома, аче и, вполне возможно, другими индейцами Южной Америки, нет убедительных доказательств того, что они жили независимо от земледелия на протяжении поколений в условиях влажного тропического леса.
Каплан и Хилл (1984) недавно сообщили о людях, живущих без какой-либо зависимости от одомашненных продуктов во влажном тропическом лесу района Ману в Перу. Сами эти люди ещё не были контактированы антропологами, однако одно покинутое лагерное стойбище было обследовано (1984:16), а одно обитаемое наблюдалось в течение нескольких минут (Хилл, личное сообщение, 1986). Для определения полного состава их рациона необходимы дальнейшие полевые исследования.
Большинство людей, живущих во влажных тропических лесах Старого Света и, по имеющимся данным, ведущих охотничье-собирательский образ жизни, схожи с пигмеями мбути на северо-востоке Заира. Они действительно уделяют много времени охоте и сбору лесных ресурсов, но часть этих ресурсов они ведут обмен с земледельцами или коммерческими торговцами на сельскохозяйственную пищу. Другие осваивают ресурсы за пределами тропического леса, включая морские побережья, озёра или реки; многие из таких людей работают на земледельцев, скотоводов, близлежащие плантации или коммерческие лесозаготовительные предприятия, чтобы частично обеспечить себя пропитанием. Кроме того, многие группы сами специализируются на производстве товаров для обмена, например на изготовлении циновок и корзин или на заготовке лекарственных растений. Р. Г. Фокс (1969) назвал такой образ жизни укладом «профессионального примитива». Хедленд назвал его «коммерческой охотой и собирательством», а многие рассматривают его как специализированную охоту и собирательство. Как бы это ни называли, это не независимая охота и собирательство во влажном тропическом лесу.
В Новом Свете те группы, которые занимаются охотой и собирательством, как правило, также практикуют земледелие. Некоторые из них, возможно, лишь недавно утратили прямую зависимость от земледелия, но все они, по всей видимости, являются бывшими земледельцами, которых недавние потрясения вынудили уйти в леса, существенно изменённые тысячелетиями переложного земледелия и веками вторжения интродуцированных видов. Иными словами, нет убедительных этнографических свидетельств того, что народы, ведущие присваивающее хозяйство, жили во влажном тропическом лесу, не полагаясь на культурные пищевые ресурсы — собственные или соседних народов.
АРХЕОЛОГИЧЕСКИЕ СВИДЕТЕЛЬСТВА ОХОТЫ И СОБИРАТЕЛЬСТВА В СРЕДАХ ВЛАЖНЫХ ТРОПИЧЕСКИХ ЛЕСОВ
Изучение следов присутствия человека в районах тропических лесов сопряжено с трудностями из-за кислых почв, высокой влажности и обильных годовых осадков. Эти факторы способствуют разрушению многих органических остатков. Кроме того, следы древних стоянок могут быть погребены на значительной глубине, что делает естественные выходы пород ещё более редкими, чем в других местах. К тому же, «самих исследователей немного, поскольку густой лесной покров в экваториальном регионе крайне затрудняет археологическую разведку» (van Noten 1982:30).
Сегодня большая часть Центральной и Западной Африки покрыта влажными тропическими лесами. Однако теперь ясно, что в эпоху последнего ледникового максимума Центральная Африка была гораздо холоднее и суше, чем сегодня (Clark 1968, 1980; Lamb 1982:26; Moreau 1963:399; van Zinderen Bakker and Mercer 1986). Геоморфологические и океанологические исследования указывают на более сухой климат около 18 000 л. н. (van Zinderen Bakker 1982:88–89). Исследования кернов донных отложений с подводного выноса реки Конго (van Zinderen Bakker and Mercer 1986:229) и отложений из района Стэнли-Пула убедительно свидетельствуют о том, что между 50 000 л. н. и 10 000 л. н. там господствовала степная растительность (Livingstone 1975:271).
Около 12 000 л. н. глобальная температура и уровень влажности значительно возросли (Lamb 1982:26). Однако неясно, как быстро расширялся африканский тропический лес и когда он достиг своего максимального распространения. На озере Босумтви в Гане между 12 500 и 9000 л. н. существовали горные редколесья и луга, и лишь к 8500 л. н. лесные ландшафты стали доминирующими (Talbot 1984:187). В высокогорьях Кении, Уганды и Танзании температура и уровень влажности повысились между 12 000 л. н. и 10 000 л. н., но не достигли уровня, наиболее благоприятного для расширения лесов, вплоть до 8000 л. н. (van Noten 1982). Отложения Стэнли-Пула показывают, что более влажные условия наступили около 10 000 л. н. (Livingstone 1975).
У края современного леса, в пещере Матупи, саванные ландшафты сохранялись вплоть до 3000 л. н. (van Noten 1977). Биогеографические данные свидетельствуют о том, что во время ледниковых максимумов (18 000 л. н.) лес распался на рефугиумы, два крупнейших из которых располагались на востоке Заира и в Камеруне — Габоне (Hamilton 1976; ср.: Prance 1982). Именно из этих районов лес начал расширяться, вероятно, около 8000–9000 л. н., но неясно, когда он достиг максимального распространения, и трудно проследить динамику его расширения.
Поскольку в Центральной Африке нет свидетельств ашельской культуры, крайне маловероятно, что какие-либо гоминиды населяли этот регион до того, как климат стал холоднее и суше (Clark 1963; 1968; 1980). Согласно современным палеоклиматическим данным по тропической Африке, стоянки людей, датируемые периодом после начала оледенения и до 9000 л. н., скорее всего, располагались в саванне или редколесье, а не во влажном лесу. Начиная примерно с 5000 л. н. стоянки могли занимать люди, практиковавшие выращивание ямса или иные формы вегетативного размножения растений. Появление производящего хозяйства в Центральной Африке связывают с расселением народов, говорящих на языках банту (Ehret 1982). Основываясь на лингвистических данных, Эрет датирует экспансию банту в экваториальные леса «как минимум вторым тысячелетием до н. э., а вероятно, и началом третьего тысячелетия» (1982:63). Дэвид приводит несколько находок подъемного материала в Камеруне, Габоне и Заире в поддержку этого утверждения (1982:92–93). Филлипсон (1985) предполагает, что выращивание ямса началось вблизи экотона леса и саванны уже в середине пятого тысячелетия до н. э.
Возможно, люди, подобные современным пигмеям, могли заниматься охотой и собирательством в расширяющихся лесных массивах Центральной Африки между 9000 л. н. и 5000 л. н., до появления каких-либо форм земледелия. Однако также возможно, что такие люди, жившие в районах, которые когда-то были саванной, осваивали расширяющийся лес, используя экотон саванны и леса. В конечном счёте мы должны искать доземледельческие стоянки, содержащие макроостатки фауны и пыльцу, указывающие на условия тропического леса. К сожалению, в регионах влажных тропических лесов подверглось систематическим раскопкам очень мало памятников. Существуют известные сборы подъемного материала, которые могли бы быть следами подлинных охотников-собирателей тропического леса; однако нет убедительных доказательств того, что это действительно так.
Археологические исследования, начатые в 1982 году Й. Пройссом, выявили каменные орудия возрастом менее 25 000 лет в районе между озером Тумба и Мбандакой в центральном Заире. Как датировка, так и предварительный палинологический анализ указывают на то, что в период заселения стоянки этот район, вероятно, представлял собой «открытый ландшафт саваннового типа вблизи заболоченных участков и галерейных лесов» (Fiedler and Preuss 1985:181–182). Найденные Пройссом орудия из молочно-белого жильного кварца типологически схожи с теми, что связаны с индустриями саванн в пещере Матупи.
Одним из наиболее перспективных районов для исследований является Нижний Заир. Систематические раскопки проводились на мысе Гомбе Дж. Коллеттом и Каеном, а также на равнине Киншасы Х. ван Морселом. Древесный уголь, по-видимому связанный с лупембанскими артефактами, датируется периодом от 15 000 до 7800 л. н. Радиоуглеродные определения, связанные с читолийскими комплексами, относятся к периоду от 8400 до 5400 л. н. (van Noten 1982:49–52). Однако с этой стратиграфической привязкой есть несколько проблем. Биотурбация привела к перемещению артефактов с разной скоростью относительно окружающего их песка. В результате «отсутствует прямая корреляция между образцами угля и артефактами, найденными на той же глубине», и невозможно выделить целостные индустрии (van Noten 1982:52). Кроме того, неизвестно, когда на этой территории сформировался лесной покров.
Габонское доисторическое общество выявило многочисленные памятники, обнаруженные на поверхности и датируемые лупембанским периодом в Габоне. Эти памятники находятся в районе, который входит в зону гипотетических западноафриканских лесных рефугиумов. Систематические раскопки не проводились (Blankoff 1969; van Noten 1982).
Таким образом, в настоящее время невозможно подтвердить гипотезу о том, что люди жили во влажных тропических лесах Африки, не завися от культурных продуктов питания. Это может быть связано с нехваткой археологических данных в бассейне Конго. Однако те немногие археологические памятники, которые были найдены в районах, в настоящее время занятых влажным тропическим лесом, по-видимому, были заселены, когда климат был суше, а среда обитания, вероятно, представляла собой редколесье или саванну. По мере дальнейшего археологического изучения Центральной Африки могут быть найдены доземледельческие памятники в условиях подлинного влажного тропического леса.
Археологические данные из Индии недостаточны для проверки нашей гипотезы. За последние 100 лет в Индии, на Шри-Ланке и на Андаманских и Никобарских островах было сделано множество находок, но, за исключением нескольких случаев, это подъемный материал из переотложенных контекстов. Кроме того, недостаточно пыльцевых и палеоботанических данных для реконструкции хронологии и распространения тропических лесов на Индостане.
Западная Индия сегодня характеризуется сухим климатом, но пыльцевые диаграммы и геоморфологические данные, начиная со среднего палеолита, указывают на то, что Раджастхан пережил две влажные фазы: одну в среднем палеолите, а другую, кратковременную, между 10 000 л. н. и 9500 л. н. (Agrawal 1982:23). От этих периодов были обнаружены лишь орудия, включённые в отложения русел ручьёв и берегов озёр.
Центральная Индия сегодня характеризуется густыми листопадными лесами. Археологические памятники, датируемые палеолитом, многочисленны, но для большинства из них данные для палеоклиматических реконструкций весьма скудны (Joshi 1978; Sharma and Clark 1983). Остатки Bos, Bubalus, Cervus и Elephas были обнаружены на памятниках Центральной Индии в слоях на протяжении всего среднего палеолита (Agrawal 1982; Wickramapathirana 1984). Несколько памятников демонстрируют непрерывность заселения от среднего палеолита до мезолита, но невозможно определить экологические условия этих стоянок (Agrawal 1982).
Крупнейшие массивы тропических и субтропических лесов в Индии сегодня находятся в восточной части страны, в штатах Ассам, Бенгалия, Бихар и Орисса (Chaudhuri 1985). К сожалению, данных для климатических реконструкций по этому району немного. Недавнее палинологическое исследование, проведённое в Бенгальском бассейне, позволило получить четыре пыльцевые диаграммы, датируемые от 7000 л. н. до настоящего времени. На их основе было выделено четыре климатические фазы, одна из которых соответствует тёплому влажному климату около 7000 л. н. (Gupta 1981). К сожалению, реконструкция не позволяет делать выводы о климате во внутренних частях Бенгальского бассейна; скорее, она указывает на эвстатические изменения уровня моря в голоцене. Археологические памятники, датируемые палеолитом, в Восточной Индии очень редки, а в тех немногих, что существуют, не найдено фаунистических остатков (Sharma 1982; Sankalia 1974, 1977).
Из Южной Индии происходят керны с пыльцой и обугленная древесина, датируемые миоценом и плиоценом, которые указывают на то, что климат в то время был очень влажным и тропическим (Awasthi and Panjwani 1984; Rao and Ramanujam 1982). Именно здесь гоминиды могли жить во влажном тропическом лесу, но таких свидетельств пока нет. Пыльцевые диаграммы с западного побережья четвертичного периода указывают на то, что уровень моря быстро поднимался около 7700–5000 л. н., достигнув современного уровня около 3600 л. н. Эти изменения уровня моря имели решающее значение для заселения западного побережья Индии в голоцене. К сожалению, климатическая реконструкция оказалась невозможной из-за скудности собранной пыльцы (Agrawal and Guzder 1972). На нижнепалеолитической стоянке Ниттур были обнаружены галечные орудия и остатки Bos (Wickramapathirana 1984), а в верхнепалеолитических пещерах Курнук — антилопы, газели, Cervus и Rhinoceros (Agrawal 1982:42), что указывает на климатические условия, более сухие, чем во влажном тропическом лесу.
Ископаемые остатки со Шри-Ланки указывают на то, что в плейстоцене на этом острове доминировали условия саванны (Wickramapathirana 1984:12–13). Этот вывод также основан на археологических находках среднеплейстоценовых Hippopotamus и Elephas, обнаруженных в верхнепалеолитических отложениях (Wickramapathirana 1984:62–63).
Плейстоценовая география Юго-Восточной Азии заметно отличалась от современной из-за колебаний уровня моря. В ледниковые периоды, когда уровень моря понижался, обнажались два крупных участка суши — Сунда и Сахул. Сунда была южным продолжением азиатского материка, включавшим современные острова Суматра, Бали, Борнео, Палаван и Ява. Шельф Сахул образовывал широкую равнину, соединявшую современный остров Новая Гвинея с Австралией. Глубоководные проливы, расположенные в районе Уоллесии, разделяли эти два массива суши. Эти геоморфологические условия в сочетании с другими региональными геологическими факторами оказали значительное влияние как на климат, так и на растительность.
В настоящее время влажные тропические леса широко распространены, но, как и в Африке, Индии и Южной Америке, так было не всегда. Верстаппен (1975:12) предположил, что со времён миоцена существовали два очага влажных тропических лесов: один, на шельфе Сунда, включающий современные районы Малайи, Суматры, Борнео и самой западной оконечности Явы; другой, покрывающий большую часть современного острова Новая Гвинея. Анализируя четвертичных млекопитающих Малезии, Медвей пришёл к выводу, что «…растительность среднеплейстоценового Сундаланда, должно быть, была физиогномически менее однородной, чем современный климаксный влажный тропический лес. Разнообразное сообщество листоядных копытных, некоторые из которых были крупными, подтверждает существование обширной кустарниковой или лесной растительности» (Medway 1972:70).
В целом реконструируется более прохладный климат, поддерживавший «мозаику лесов, кустарников и лугов» (Medway 1972:71). Для района пещеры Ниа на Борнео «климаксная лесная растительность была более ксероморфной, чем современный низинный влажный тропический лес» (Medway 1972:71).
С подъёмом уровня моря примерно между 15 000 и 8000 л. н. и последовавшим за этим формированием существующих сегодня островов влажный тропический лес расширил свой ареал в условиях преобладающего более тёплого и влажного климата. Беллвуд (1985:161) считает, что до голоцена охотники и собиратели не осваивали участки влажного тропического леса в Индо-Малайзии, но археологические данные из Малайзии, по его мнению, свидетельствуют о том, что по мере сокращения более благоприятных муссонных лесов и парковых ландшафтов освоение влажных тропических лесов стало распространённым адаптивным механизмом после 10 000 л. н. (см. ниже).
Значительно больше внимания уделялось палеоэкологической реконструкции Новой Гвинеи (см. Flenley 1967, 1972; Hope and Hope 1976; Nix and Kalma 1972; Powell 1976, 1977; Walker 1970, 1972). Из этих исследований следует, что до 17 000 лет назад климат был прохладнее и суше. Таким образом, влажный тропический лес был ограничен предгорьями и горными склонами примерно до 300 м, выше которых существовали горные открытые леса и саванны (Powell 1976:176). Между 17 000 и 10 000 лет назад наступил период повышенной аридности, который сильно повлиял на влажные тропические леса и во многих районах привёл к их деградации (Nix and Kalma 1972). Примерно к 8000 лет назад ледники полностью растаяли, и болота и влажные тропические леса распространились на территории, которые ранее были саваннами и открытыми лесами. Это расширение влажного тропического леса изолировало небольшие «островки» лугов на больших высотах в горах. Незадолго до и во время этого периода появляются свидетельства о незначительной локальной вырубке лесов. Эти факторы, наряду с предположением о том, что вымирание крупных сумчатых 9000 лет назад привело к большей зависимости от растительных ресурсов (Hope and Hope 1976), могут указывать на связь с развитием раннего земледелия.
Существует множество проблем, с которыми сталкиваются те, кто хочет получить достоверные данные из археологической летописи Юго-Восточной Азии и Малайзии. Хаттерер, например, писал: «палеоклиматологические и палеонтологические свидетельства настолько расплывчаты, а надёжная археологическая информация [по сути] отсутствует» (Hutterer 1977:58). Фленли отмечал, что «масштабная вырубка лесов произошла в столь многих экваториальных регионах, что зачастую невозможно с какой-либо степенью уверенности реконструировать исходные границы растительности по сохранившимся реликтовым участкам» (Flenley 1979:3).
Как и в любой другой лесистой местности, весьма вероятно, что выявлен не весь спектр памятников. Это особенно актуально для данного региона мира, поскольку эвстатические подъёмы уровня моря в постплейстоцене затопили и разрушили многие низинные и прибрежные стоянки (Bellwood 1985; Gorman 1971).
Неудивительно, что остаётся неясным, когда в Сунде и Сахуле впервые начали практиковать садоводство. Вероятно, зачаточные формы садоводства могут уходить корнями в глубокую древность (Bellwood 1979; Gorman 1971). На Тайване Цукада (1966, 1967) указывает на возможное нарушение лесной растительности, вероятно связанное с подсечно-огневым земледелием, начиная примерно с 10 000 л. н. Аналогичные выводы подтверждаются пыльцевыми данными на Суматре (Flenley 1979). На Новой Гвинее зачаточное садоводство явно практиковалось уже 9000 лет назад (White and O'Connell 1982). Если это не было независимым изобретением, то для островов к западу предполагается ещё более ранняя дата. Кроме того, население, жившее во влажном тропическом лесу в это время и не принимавшее непосредственного участия в возделывании, могло иметь доступ к таким ресурсам через собирательство или обмен — занятия, которые могут не найти отражения в археологических отложениях.
Есть косвенные свидетельства использования влажного тропического леса доисторическими собирателями на Филиппинах, где в пещере Табон на Палаване зафиксированы слои обитания от 35 000 л. н. до 9000 л. н. (R. B. Fox 1970:38–44). Фаунистические остатки — «в основном мелкие птицы, летучие мыши и звери» при заметном отсутствии крупных млекопитающих (R. B. Fox 1970:38) — не противоречат собирательству во влажном тропическом лесу. Хотя пещера теперь расположена у самого океана, отсутствие морских раковин ни в одном из слоёв позволило Фоксу предположить, что стоянка была заселена в период, когда шельф Сунда был обнажён и расстояние до побережья в то время достигало 35 км. Это исключает возможность того, что зависимость от морских ресурсов сделала возможным существование собирателей в этом районе. Однако без более детальных экологических данных и фаунистического анализа невозможно определить, за счёт каких ресурсов существовали эти люди.
Безусловно, наиболее убедительные археологические свидетельства обитания охотников и собирателей во влажном тропическом лесу до появления земледелия получены в Малайзии. Фаунистические данные с хоабиньских стоянок на Малайском полуострове, обобщённые Горманом (1971: табл. 2) и обсуждённые Беллвудом (1985), указывают на освоение различных сред обитания, включая влажные тропические леса. Из двенадцати стоянок в Малайе, которые перечисляет Горман, по крайней мере четыре содержат фаунистические остатки, которые могут указывать на освоение исключительно влажного тропического леса. Это Гуа Каджанг, Кота Тонгкат, Гуа Дебу и Гуа Кечил. Все четыре эти стоянки, а также недавно раскопанная Гуа Ча (Bellwood 1985; Bellwood and Adi 1981), содержат фаунистические остатки, указывающие на влажный тропический лес: три вида оленей, обезьяны и гиббоны, белки, летучие лисицы и носороги. Эти памятники охватывают длительный хронологический период, начиная с 10 000 л. н., а обугленный рис, указывающий на зависимость от сельскохозяйственных продуктов, появляется в Гуа Ча лишь к 900 л. н. (Bellwood 1985:166). Хотя по описаниям, приведённым в вышеуказанных источниках, это трудно определить, возможно, что эти стоянки являются следами того, что Харрисон (1972) назвал «кратковременными визитами», или местами ограниченного использования, а не постоянного обитания.
Тем не менее многочисленные памятники в центральных районах Малайского полуострова, по-видимому, являются наиболее перспективными объектами для проверки нашей нулевой гипотезы о том, что доземледельческие собиратели никогда не жили в условиях влажного тропического леса. Этот район, безусловно, заслуживает дальнейшего исследования с учётом данной гипотезы.
Существует множество археологических памятников островной Юго-Восточной Азии (см. Bellwood 1985), но отсутствуют чёткие свидетельства о собирателях во влажных тропических лесах. На Борнео, в пещере Ниа, Харрисон отмечает остатки двух видов горных млекопитающих (1972:33). Он также упоминает, что палеолитические материалы на западной стороне острова найдены вблизи низинных болот, приливно-отливных зон и береговой линии, что указывает на хозяйственное освоение этих районов. Стоянка Homo erectus в Сангиране находилась у береговой линии; недавний анализ пыльцы из эстуарных отложений показал наличие мангровых зарослей, пальм нипа и деревьев пандануса (Bellwood 1985:27).
Самая ранняя дата появления человека на Новой Гвинее — 40 000 л. н., что подтверждается несколькими каменными артефактами с полуострова Хуон (Groube et al. 1986). Три пещерные стоянки указывают на заселение Новой Ирландии, датируемое вплоть до 33 000 л. н. (Allen et al. 1988). Все эти стоянки во времена их заселения (как и сегодня) находились в непосредственной близости от побережья и содержат скопления раковин, что указывает на прибрежное и морское собирательство (Allen et al. 1988). На Новой Гвинее стоянка Косипе датируется 26 000 л. н. и расположена в высокогорье, в экотоне между лесом и лугом (Hope and Hope 1976). Существует также ряд недостаточно точно датированных возможных плейстоценовых и раннеголоценовых стоянок в подобных высокогорных условиях. Это Номбе, Юку, Кафавана, Киова, Маним и Батари (Bulmer 1974; Christensen 1975; Hope and Hope 1976; White 1972). Везде, где сохранились кости, представлены как лесные, так и луговые виды (Hope and Hope 1976:43). На стоянке Кук (Golson 1976; Golson and Hughes 1977) данные свидетельствуют о том, что к 9000 л. н. уже использовалась сеть земледельческих дренажных каналов (White and O'Connell 1982).
Можно считать твёрдо установленным, что все прибрежные районы Большой Австралии были заселены по крайней мере 26 000 лет назад, а возможно, и 40 000 лет назад (Allen et al. 1988; Birdsell 1977). Все описанные стоянки указывают на то, что осваивались речные долины, аллювиальные равнины, солоноватые болота, контактные зоны между равнинами и карстовыми известняковыми холмами, а также обширные заросли дикорастущих и, возможно, культивируемых саговых пальм (Ohtsuka 1977; Rhoads 1980; White and O'Connell 1982). Географический ареал влажных тропических лесов на северо-востоке Австралии слишком ограничен, чтобы его обитатели не осваивали обширные открытые местообитания на западе или прибрежную равнину на востоке.
Неясно, в какой степени Южная и Центральная Америка были покрыты тропическими лесами в прошлом. Уиттен называет голоценовую амазонскую Южную Америку «климатологической terra incognita» (Whitten 1979:239) и решительно критикует палеоклиматологические реконструкции Южной Америки, основанные на модели Хаффера о плейстоценовых рефугиумах влажных тропических лесов. Хаффер и другие (напр., Prance 1982; Vanzolini 1973) считают, что четвертичный период в Южной Америке был временем резких климатических изменений. Влажные тропические леса несколько раз сокращались и расширялись. В позднем плейстоцене влажные тропические леса в Южной и Центральной Америке сократились до нескольких небольших рефугиумов, разделённых широкими полосами саванн и лугов (Ab'Saber 1982:57; Toledo 1983:104).
Конец периода рефугиумов около 12 000 л. н. примерно соответствует самым ранним общепризнанным свидетельствам заселения Южной Америки (Lynch 1974). Если теория рефугиумов верна, ареалы влажных тропических лесов, возможно, всё ещё были ограничены в период между первым появлением людей и широким распространением земледелия. Поскольку, возможно, ещё слишком рано полностью доверять модели рефугиумов, надёжная проверка должна заключаться в анализе фаунистических, ботанических и пыльцевых данных с самих памятников.
Лишь одна хорошо известная группа ранних южноамериканских стоянок могла находиться в тропическом лесу: пещерные стоянки в районе Лагоа-Санта в штате Минас-Жерайс, Бразилия (Evans 1950; Lathrap 1968; Lynch 1974). Хёрт описывает современную среду в этом районе как «в основном тропический лес саваннового типа» (Hurt 1960:569), тогда как Эванс описывает весь бассейн Параны, где расположены стоянки, как «район низменностей и равнин, перемежающихся лесами и лугами» (Evans 1964:443). Хотя климатическая история района неизвестна (Hurt 1960:569), сталагмиты и известковые натеки на полу пещер указывают на то, что когда-то там было гораздо влажнее, чем сегодня. Эта влажная фаза была синхронна или более поздняя по отношению к некоторым периодам обитания в пещерах, но невозможно сказать, соответствует ли она среде влажного тропического леса, заселяли ли люди пещеры во время влажной фазы и предшествовала ли влажная фаза земледелию (Hurt 1960:584). Кроме того, датировка появления человека на этих стоянках вызывает сомнения. В ранних публикациях утверждалось, что остатки людей были найдены на этих стоянках в ассоциации с вымершими плейстоценовыми животными, но пересмотр отчётов и последующие археологические работы не выявили практически никаких доказательств такой ассоциации (Evans 1964; Hurt 1960; Hurt and Blasi 1969; Lynch 1974).
Другие, по-видимому, ранние пещерные стоянки в Бразилии, в муниципалитете Сентрал в штате Баия и в районе Варзеландия в штате Минас-Жерайс, в настоящее время находятся в горных саваннах (Weber 1985), но вполне могли располагаться в зоне тропического леса в более влажный период, подобный тому, на который указывают известняковые отложения в пещерах Лагоа-Санта. Фаунистический комплекс стоянок в Баии может указывать на условия влажного тропического леса (Weber 1985:176). В настоящее время эти стоянки раскапываются; на данный момент опубликованных данных нет.
В Коста-Рике Снарскис (1979) сообщает о каменоломне под названием Турриальба, которая, по-видимому, имеет очень ранний слой с каменными орудиями с желобчатыми наконечниками, которые, как предполагается, датируются от 13 000 до 8500 л. н. (Lynch 1974), то есть задолго до предполагаемого появления земледелия в Новом Свете. Сегодня естественная растительность вокруг стоянки — это влажный тропический лес. К сожалению, есть ряд проблем с использованием этой стоянки в качестве доказательства существования охотников и собирателей в тропическом лесу. Во-первых, датировка стоянки по морфологии орудий чревата неточностями. Во-вторых, нет данных о том, где жили люди, использовавшие эту стоянку, и как они добывали пропитание. Возможно, они осваивали другие среды и заходили в лес лишь для добычи камня. Наконец, для этой стоянки нет палеоклиматической реконструкции. Если модель рефугиумов верна, то, вероятно, там не было тропического леса, когда охотники и собиратели изготавливали там орудия.
Мы проанализировали этнографическую и археологическую литературу в поисках свидетельств об охотниках и собирателях, которые жили во влажном тропическом лесу и добывали пропитание исключительно из него. Мы не смогли найти ни одного однозначного этнографического описания людей, живущих в тропическом лесу и не зависящих от одомашненных растений и животных. Хотя есть сообщения о народах, живших в тропических лесах независимо от одомашненных растений и животных в недавнем прошлом, таких людей никогда не наблюдали напрямую. Многие из групп, которые ещё несколько десятилетий назад считались полноценными охотниками и собирателями, сегодня рассматриваются многими этнографами как бывшие подсечно-огневые земледельцы, которые были вынуждены перейти к жизни за счёт собирательства из-за конфликтов с другими коренными группами или с европейцами. В каждом случае это быстро исчезающие реликтовые популяции, ведущие собирательский образ жизни в местообитаниях, которые были кардинально изменены переложным земледелием и интродукцией экзотических видов. Более того, нет конкретных этнографических доказательств, подтверждающих такие сообщения.
Мы также не смогли найти однозначных археологических свидетельств стоянок, населённых людьми, жившими независимо от земледелия во влажном тропическом лесу. Существует несколько памятников, которые, возможно, были населены охотниками-собирателями тропического леса, но информация о фаунистических остатках и палеоклиматической реконструкции недостаточно полна, чтобы окончательно отнести какую-либо из этих стоянок к условиям влажного тропического леса в период их заселения. Безусловно, наиболее перспективным районом является центральная Малайзия, где есть по крайней мере пять стоянок, датируемых периодом от 10 000 до 3000 л. н., с фаунистическими остатками, соответствующими использованию исключительно ресурсов влажного тропического леса. Эти и другие стоянки в Юго-Восточной Азии заслуживают дальнейшего исследования с учётом нашей гипотезы.
Учитывая отсутствие чётких доказательств того, что современные люди ведут полностью обособленный собирательский образ жизни в условиях влажных тропических лесов, этнографам и другим исследователям следует критически переосмыслить широко распространённую тенденцию изображать ныне живущие группы как лишь недавно вышедшие из изоляции. Если современные люди живут во влажном тропическом лесу, из этого не обязательно следует, что они жили так на протяжении тысячелетий. Столь же вероятным теперь представляется то, что они смогли выжить в тропических лесах благодаря контактам с переложными земледельцами и/или новым местообитаниям, созданным ими.
Как отмечали Шрир и другие, пришло время изменить наше представление об охотниках-собирателях как о «типичных изолятах» (Schrire 1984:2) и перестать рассматривать их в историческом вакууме.
Основываясь на нашем обзоре, мы считаем весьма вероятным, что адаптивные возможности человека не позволяли ему существовать в течение длительных периодов времени в тропических лесах до тех пор, пока не были найдены способы изменения плотности и распределения съедобных ресурсов путём одомашнивания растений и расчистки климаксных лесов. Это означает, что спектр сред, которые доземледельческие люди могли осваивать, был более ограничен, чем считалось ранее. Таким образом, необходима переоценка вариативности адаптивных стратегий доземледельческих людей. Более того, сужение предполагаемого ареала людей палеолита требует корректировки оценок общей численности человеческой популяции до неолита. Например, Бёрдселл оценивает мировую численность Homo erectus в среднем плейстоцене в 400 000 человек, основываясь на их заселении 90 % территории Африки и 20 % Европы и Азии. Он оценивал численность Homo sapiens в верхнем палеолите в 2,2 миллиона человек, основываясь на их заселении 90 % территории Африки, 40 % Европы и 60 % Азии (Birdsell 1972:291–292). В зависимости от того, какую долю этих территорий он считал влажным тропическим лесом, наши данные указывают на то, что его оценки должны быть скорректированы в сторону уменьшения.
Хассан выдвигает гипотезу о том, что на тропические леса приходилось 20 % ареала доземледельческих людей в верхнем плейстоцене. Из-за предполагаемой низкой плотности населения собирателей во влажных тропических лесах он полагает, что обитатели тропических лесов составляли менее 2 % от общей численности человеческой популяции в 8,6 миллиона человек (Hassan 1981:204). Следовательно, модель Хассана мало изменилась бы при исключении людей из тропических лесов. Однако, если, как теперь представляется вероятным, значительная часть территории, которая ранее считалась влажным тропическим лесом в среднем и позднем плейстоцене, на самом деле была саванной или редколесьем, то эти районы могли прокормить гораздо более высокую плотность населения (Hassan 1981:204), что привело бы к более высоким оценкам мировой популяции.
Если Homo sapiens никогда не жили во влажных тропических лесах без земледелия, то крайне маловероятно, что более ранние гоминиды жили так. Таким образом, мы должны тщательно пересмотреть концепции, касающиеся факторов отбора, действующих на гоминид, основанные на данных о современных людях, живущих сегодня во влажных тропических лесах. Например, обосновывая свои выводы относительно скелетной аллометрии, веса, пропорций конечностей и бипедальности Australopithecus afarensis по сравнению с постаустралопитековыми гоминидами, Джангерс (1982), Уолпофф (1983) и Джангерс и Стерн (1983) используют пропорции тела и аллометрическое масштабирование современных африканских пигмеев в качестве эталонных данных. Если пигмеи сохранили размеры и пропорции тела своих предков схожего размера, обитавших в саванне, то они являются корректными аналогами для других, более крупных людей и более мелких австралопитеков. Однако возможно, что размеры и пропорции тела могли эволюционировать достаточно быстро, так что малый рост пигмеев, пропорции конечностей и другие черты представляют собой адаптацию к факторам отбора во влажном тропическом лесу, даже если они жили там всего несколько тысяч лет (Contieri and Cavalli-Sforza 1957, 1960; Williams 1987). Если это так, то пигмеи могут представлять собой некорректную точку отсчёта для расчётов аллометрических отношений между пре- и постаустралопитековыми гоминидами, которые вели собирательство в саванне и редколесье.
Необходимы дальнейшие этнографические и археологические работы в районах влажных тропических лесов, прежде чем мы сможем окончательно исключить возможность существования человека во влажных тропических лесах до изобретения земледелия. Мы надеемся, что идеи и доказательства, представленные в этой статье, побудят специалистов по экологии человека, археологов и палеонтологов уделить гораздо большее внимание этим важным и всё ещё плохо изученным районам мира.
Мы хотели бы поблагодарить Ричарда Рэнгема за его изначальную идею, а также Десмонда Кларка, Карла Хаттерера и Анну Рузвельт за полезные комментарии к раннему варианту статьи. Благодарим также Джозефа Бёрдселла и Кирка Эндикотта, которые предоставили ключевые ссылки и высказали ценные замечания, а также одного анонимного рецензента, чьи комментарии улучшили окончательный вариант статьи. Эта работа была частично поддержана грантом Академического сената UCLA.
Ab'Saber, Aziz Nacib 1982 The Paleoclimate and Paleoecology of Brazilian Amazonia. In Biological Diversification in the Tropics. Ghillean T. Prance, ed. Pp. 41-59. New York: Columbia University Press.
Agrawal, D. P. 1982 The Archaeology of India. London: Scandinavian Institute of Asian Studies Monograph 46.
Agrawal, D. P., and S. T. Guzder 1972 Quaternary Studies on the Western Coast of India: Preliminary Observations. Paleobotanist 21(2):216-222.
Allen, Jim, Chris Gosden, Rhys Jones, and J. Peter White 1988 Pleistocene Dates for the Occupation of New Ireland, Northern Melanesia. Nature 331:707-709.
Awasthi, N., and M. Panjwani 1984 Studies on Some More Carbonized Woods from the Neogene of Kerala Coast, India. Palaeobotanist 32(3):326-336.
Bahuchet, Serge, and Henri Guillaume 1982 Aka-Farmer Relations in the Northwest Congo Basin. In Politics and History in Band Societies. E. Leacock and R. Lee, eds. Pp. 189-211. Cambridge: Cambridge University Press.
Bailey, Robert C. 1982 Development in the Ituri Forest of Zaire. Cultural Survival Quarterly 6(2):23-25. 1985 The Socioecology of Efe Pygmy Men in the Ituri Forest, Zaire. Ph.D. dissertation, Harvard University.
Bailey, Robert C., and Nadine R. Peacock 1988 Efe Pygmies of Northeast Zaire: Subsistence Strategies in the Ituri Forest. In Coping with Uncertainty in Food Supply. I. de Garine and G. A. Harrison, eds. Pp. 88-117. Oxford: Clarendon Press.
Beckerman, S. 1979 The Abundance of Protein in Amazonia: A Reply to Gross. American Anthropologist 81(3):533-560.
Bellwood, Peter 1979 Man's Conquest of the Pacific. New York: Oxford University Press. 1985 Prehistory of the Indo-Malaysian Archipelago. Sydney: Academic Press.
Bellwood, Peter, and Adi Hadji Taha 1981 A Home for Ten Thousand Years. Hemisphere 25(5):310-313.
Birdsell, Joseph H. 1972 Human Evolution: An Introduction to the New Physical Anthropology. Chicago: Rand McNally. 1977 The Recalibration of a Paradigm for the First Peopling of Greater Australia. In Sunda and Sahul. J. Allen, J. Golson, and R. Jones, eds. Pp. 113-168. New York: Academic.
Blankoff, M. B. 1969 L'ttat des Recherches Prehistoriques au Gabon. Etudes et Documents Tchadiens, Memoires I:62-80.
Bourliere, F. 1973 The Comparative Ecology of Rain Forest Mammals in Africa and Tropical America: Some Introductory Remarks. In Tropical Forest Ecosystems in Africa and South America: A Comparative Review. B. J. Meggers, E. S. Ayensu, and D. Duckworth, eds. Pp. 279-292. Washington: Smithsonian Institution Press.
Bulmer, S. 1974 Settlement and Economy in Prehistoric Papua New Guinea: A Review of the Archaeological Evidence. Working Papers in Anthropology, Archaeology, Linguistics and Maori Studies No. 30. Auckland, NZ: Department of Anthropology, University of Auckland.
Cavalli-Sforza, L. L. 1972 Pygmies, An Example of Hunter-Gatherers, and Genetic Consequences for Man of Domestication of Plants and Animals. In Human Genetics: Proceedings of the Fourth International Conference on Human Genetics. J. deGrouchy, F. Ebling, and I. Henderson, eds. Pp. 79-95. Amsterdam: Excerpta Medica. 1986 African Pygmies. New York: Academic Press.
Chagnon, N., and R. Hames 1979 Protein Deficiency and Tribal Warfare in Amazonia: New Data. Science 203:910-913.
Chaudhuri, A. B. 1985 Environment and Resources of Tropical and Temperate Forests of India. Dehra Dun, India: International Book Distributors.
Christensen, O. 1975 Hunters and Horticulturalists: A Preliminary Report on the 1972-4 Excavations in the Manim Valley, Papua New Guinea. Mankind 10:24-36.
Cipriani, Lidio 1966 The Andaman Islanders. London: Weidenfeld and Nicolson.
Clark, J. Desmond 1963 Prehistoric Cultures of Northeast Angola and their Significance in Tropical Africa. Lisbon: Companhia de Diamantes de Angola Publicações Culturais. 1968 Further Palaeo-Anthropological Studies in Northern Lunda. Lisbon: Companhia de Diamantes de Angola Publicações Culturais. 1980 Early Human Occupation and Exploitation of Savanna Environments. In Human Ecology in Savanna Environments. D. R. Harris, ed. Pp. 32-40. New York: Academic Press.
Clastres, P. 1972 The Guayaki. In Hunters and Gatherers Today. M. G. Bicchieri, ed. Pp. 138-174. New York: Holt, Rinehart and Winston.
Contieri, F., and L. L. Cavalli-Sforza 1957 Evolution of the Human Constitutional Phenotype: An Analysis of Mortality Effects. Selezione per Caratteri Quantitativi nell'uomo. Atti dell'Associazione Genetica Italiana Convegno di Genetica, Anno 29:3-14. 1960 Selezione per Caratteri Quantitativi nell'uomo. Atti dell'Associazione Genetica Italiana 5:295-304.
Das, Shiva Tosh 1982 The Andaman and Nicobar Islands: A Study of Habitat, Economy and Society: From Tradition to Modernity. New Delhi: Sagar Publications.
David, Nicholas 1982 Prehistory and Historical Linguistics in Central Africa: Points of Contact. In The Archaeological and Linguistic Reconstruction of African History. C. Ehret and M. Posnansky, eds. Pp. 78-95. Berkeley: University of California Press.
Dutta, Pratap C. 1978 The Great Andamanese: Past and Present. Calcutta: Anthropological Survey of India.
Eder, James F. 1978 The Caloric Returns to Food Collecting: Disruption and Change Among the Batak of the Philippine Tropical Forest. Human Ecology 6:55-69. 1984 The Impact of Subsistence Change on Mobility and Settlement Pattern in a Tropical Forest Foraging Economy: Some Implications for Archeology. American Anthropologist 86:837-853.
Ehret, Christopher 1982 Linguistic Inferences about Early Bantu Expansion. In The Archaeological and Linguistic Reconstruction of African History. C. Ehret and M. Posnansky, eds. Pp. 57-65. Berkeley: University of California Press.
Eisenberg, John F. 1983 Behavioral Adaptations of Higher Vertebrates in Tropical Forests. In Tropical Rain Forest Ecosystems: Structure and Function. F. B. Golley, ed. Pp. 267-278. New York: Elsevier.
Endicott, Kirk 1982 The Effects of Logging on the Batek of Malaysia. Cultural Survival Quarterly 6(2):19-20. 1984 The Economy of the Batek of Malaysia: Annual and Historical Perspectives. Research in Economic Anthropology 6:29-52.
Estioko-Griffin, A., and P. Bion Griffin 1981 Woman the Hunter: The Agta. In Woman the Gatherer. F. Dahlberg, ed. Pp. 121-151. New Haven: Yale University Press.
Evans, Clifford, Jr. 1950 A Report on Recent Archaeological Investigations in the Lagoa Santa Region of Minas Gerais, Brazil. American Antiquity 15(4):341-343. 1964 Lowland South America. In Prehistoric Man in the New World. J. D. Jennings and E. Norbeck, eds. Pp. 419-450. Chicago: University of Chicago Press.
Fernandes, Jose L. 1959 The Xeta-A Dying People in Brazil. Bulletin of the International Committee on Urgent Anthropological and Ethnological Research 2:22-26.
Fieldler, Lutz, and Johannes Preuss 1985 Stone Tools from the Inner Zaire Basin (Region de l'Equateur). The African Archaeological Review 3:179-187.
Fittkau, E. J., and H. Klinge 1973 On Biomass and Trophic Structure of the Central Amazonian Rain Forest Ecosystem. Biotropica 5(1):2-14.
Flenley, John 1967 The Present and Former Vegetation of the Wabag Region of New Guinea. Ph.D. dissertation, Australian National University, Canberra. 1972 Evidence of Quaternary Vegetational Change in New Guinea. In The Quaternary Era in Malesia. P. Ashton and M. Ashton, eds. Pp. 98-108. Aberdeen: University of Aberdeen. 1979 The Equatorial Rain Forest: A Geological History. London: Butterworths.
Fox, R. B. 1970 The Tabon Caves: Archaeological Explorations and Excavations on Palawan Island, Philippines. Manila: National Museum Monograph I.
Fox, R. G. 1969 "Professional Primitives": Hunters and Gatherers of Nuclear South Asia. Man in India 49(2):139-160.
Gardner, Peter 1965 Ecology and Social Structure in Refugee Populations: The Paliyans of South India. Ann Arbor: University Microfilms.
Golley, F. B. 1975 Productivity and Mineral Cycling in Tropical Forests. In Productivity of World Ecosystems. D. Reichle, F. Franklin, and D. Goodall, eds. Pp. 106-115. Washington: National Academy of Sciences.
Golson, J. 1976 Archaeology and Agricultural History in the New Guinea Highlands. In Problems in Economic and Social Archaeology. H. Longworth and K. E. Wilson, eds. Pp. 201-220. London: Duckworth.
Golson, J., and P. Hughes 1977 Ditches Before Time. Hemisphere 21(2):13-21.
Gorman, Chester 1971 The Hoabinhian and After: Subsistence Patterns in Southeast Asia During the Late Pleistocene and Early Recent Periods. World Archaeology 2(3):300-320.
Griffin, P. B. 1984 Agta Forager Women in the Philippines. Cultural Survival Quarterly 8(2):21-23.
Groube, L., J. Chappell, J. Muke, and D. Price 1986 A 40,000 Year-old Human Occupation Site at Huon Peninsula, Papua New Guinea. Nature 324:453-455.
Gross, Daniel R. 1975 Protein Capture and Cultural Development in the Amazon Basin. American Anthropologist 77:526-549.
Gupta, Hari Pal 1981 Paleoenvironments During Holocene Time in Bengal Basin, India, as Reflected by Palyno-stratigraphy. Palaeobotanist 27(2):138-160.
Hallet, Jean-Pierre 1973 Pygmy Kitabu. Greenwich, CT: Fawcett Crest.
Hallsworth, E. G. 1982 The Human Ecology of Tropical Forest. In Socioeconomic Effects and Constraints in Tropical Forest Management. E. G. Hallsworth, ed. Pp. 1-8. New York: Wiley.
Hames, Raymond B., and William T. Vickers, eds. 1983 Adaptive Responses of Native Amazonians. New York: Academic Press.
Hamilton, A. C. 1976 The Significance of Patterns of Distribution Shown by Forest Plant and Animals in Tropical Africa for the Reconstruction of Upper Pleistocene Palaeoenvironments: A Review. Palaeoecology of Africa 9:63-67.
Harako, R. 1976 The Mbuti as Hunters: A Study of Ecological Anthropology of the Mbuti Pygmies. Kyoto University. African Studies X:37-99.
Harris, M. 1984 Animal Capture and Yanomamo Warfare: Retrospect and New Evidence. Journal of Anthropological Research 40(1):183-201.
Harrison, T. H. 1972 Prehistory of Borneo. Asian Perspectives 13:17-45.
Hart, T. B., and J. A. Hart 1986 The Ecological Basis of Hunter-Gatherer Subsistence in African Rain Forests: The Mbuti of Eastern Zaire. Human Ecology 14:29-56.
Hassan, Fekri A. 1981 Demographic Archaeology. New York: Academic Press.
Headland, Thomas N. 1985 Why Foragers Do Not Become Farmers: A Historical Study of a Changing Ecosystem and Its Effects on a Negrito Hunter-Gatherer Group in the Philippines. Ph.D. dissertation, University of Hawaii. 1987 The Wild Yam Question: How Well Could Independent Hunter-gatherers Live in a Tropical Rainforest Environment? Human Ecology 15(4):463-491.
Heatwole, H. 1983 Physiological Responses of Animals to Moisture and Temperature. In Tropical Rain Forest Ecosystems. F. B. Golley, ed. Pp. 239-265. New York: Elsevier.
Heine-Geldern, Robert, ed. 1958 A Special List of Tribes of Primitive Hunters and Food-gatherers. Bulletin of the International Committee on Urgent Anthropological and Ethnological Research 1:13-47.
Henry, Jules 1941 Jungle People, A Kaingang Tribe of the Highlands of Brazil. Richmond: J. J. Augustin.
Hiernaux, J. 1977 Long-Term Biological Effects of Human Migration from the African Savanna to the Equatorial Forest: A Case Study of Human Adaptation to a Hot and Wet Climate. In Population Structure and Human Variation. G. A. Harrison, ed. Pp. 187-218. Cambridge: Cambridge University Press.
Hill, Kim 1982 Hunting and Human Evolution. Journal of Human Evolution 11:521-544. 1983 Adult Male Subsistence Strategies Among Ache Hunter-Gatherers of Eastern Paraguay. Ph.D. dissertation, University of Utah.
Hill, Kim, and Kristen Hawkes 1983 Neotropical Hunting Among the Ache of Eastern Paraguay. In Adaptive Responses of Native Amazonians. R. Hames and W. Vickers, eds. Pp. 139-188. New York: Academic Press.
Hoffman, Charles L. 1984 Punan Foragers in the Trading Networks of Southeast Asia. In Past and Present in Hunter Gatherer Studies. C. Schrire, ed. Pp. 123-149. Orlando: Academic Press.
Holmberg, Allan 1950 Nomads of the Long Bow: The Siriono of Eastern Bolivia. Institution of Social Anthropology Publication No. 10. Washington: Smithsonian Institution.
Hope, J., and G. Hope 1976 Palaeoenvironments for Man in New Guinea. In The Origin of the Australians. R. L. Kirk and A. G. Thorne, eds. Pp. 29-54. Canberra: Australian Institute of Aboriginal Studies.
Hurt, Wesley R. 1960 The Cultural Complexes From the Lagoa Santa Region, Brazil. American Anthropologist 62:569-585.
Hurt, Wesley R., and Oldemar Blasi 1969 O Projeto Arqueologico "Lagoa Santa"-Minas Gerais, Brasil. Arquivos do Museu Paranaense, Nova Serie, Arqueologia 4:1-63.
Hurtado, A. M., K. Hawkes, K. Hill, and H. Kaplan 1985 Female Subsistence Strategies Among Ache Hunter-Gatherers of Eastern Paraguay. Human Ecology 13(1):1-28.
Hutterer, K. L. 1977 Reinterpreting the Southeast Asian Palaeolithic. In Sunda and Sahul. J. Allen, J. Golson, and R. Jones, eds. Pp. 31-71. New York: Academic Press. 1983 The Natural and Cultural History of Southeast Asian Agriculture. Anthropos 78:169-212.
Ichikawa, M. 1983 An Examination of the Hunting-Dependent Life of the Mbuti Pygmies, Eastern Zaire. African Study Monographs 1:55-68.
Isaac, Barry L. 1977 The Siriono of Eastern Bolivia: A Reexamination. Human Ecology 5(2):137-154.
Jackson, Jean 1975 Recent Ethnography of Indigenous Northern Lowland South America. Annual Review of Anthropology 4:307-340.
Jahn, A. 1914 Parauhanos und Guajiros und die Pfahlbauten am See von Maracaibo. Zeitschrift fur Ethnologie 46:267-283.
Janzen, D. H. 1975 Ecology of Plants in the Tropics. London: Arnold.
Joshi, Ramchandra V. 1978 Stone Age Cultures of Central India. Poona, India: Deccan College Postgraduate and Research Institute.
Jungers, William L. 1982 Lucy's Limbs: Skeletal Allometry and Locomotion in Australopithecus afarensis. Nature 297:676-678.
Jungers, William L., and Jack T. Stern, Jr. 1983 Body Proportions, Skeletal Allometry and Locomotion in the Hadar Hominids: A Reply to Wolpoff. Journal of Human Evolution 12:673-684.
Kaplan, H., and K. Hill 1984 The Mashco-Piro Nomads of Peru. Anthroquest 29:1-17.
Kloos, P. 1977 The Akuriyo of Surinam: A Case of Emergence from Isolation. International Work Group for Indigenous Affairs, Document 27. Copenhagen: International Secretariat of the Work Group for Indigenous Affairs.
Kozak, Vladimir, D. Baxter, L. Williamson, and R. Carneiro 1979 The Heta Indians: Fish in a Dry Pond. American Museum of Natural History Anthropological Papers 55(6):351-434.
Lal, Parmanand 1977 Great Nicobar Island: A Study in Human Ecology. Calcutta: Anthropological Survey of India Memoir 43.
Lamb, H. H. 1982 Reconstruction of the Course of Postglacial Climate over the World. In Climatic Change in Later Prehistory. A. F. Harding, ed. Pp. 11-32. Edinburgh: Edinburgh University Press.
Lathrap, Donald W. 1968 The "Hunting" Economies of the Tropical Forest Zone of South America: An Attempt at Historical Perspective. In Man the Hunter. R. B. Lee and I. DeVore, eds. Pp. 23-29. Chicago: Aldine.
Lebar, F. M., ed. 1972 Ethnic Groups in Insular Southeast Asia. Vol. 1: Indonesia, Andaman Islands and Madagascar. New Haven: HRAF Press.
Lee, R. B., and I. DeVore 1968 Man the Hunter. Chicago: Aldine.
Leigh, E. G., Jr. 1975 Structure and Climate in Tropical Rain Forest. Annual Review of Ecology and Systematics 6:67-86.
Livingstone, D. A. 1975 Late Quaternary Climatic Change in Africa. Annual Review of Ecology and Systematics 6:249-280.
Lowie, Robert H. 1963 The Bororo. In The Handbook of South American Indians, Vol. 1. J. H. Steward, ed. Pp. 419-434. New York: Cooper Square Publishers.
Lozano, Pedro 1873-74 Historia de la Conquista del Paraguay, Rio de La Plata y Tucuman. In Biblioteca del Rio de la Plata. Andres Lamas, ed. 5 vols. Buenos Aires: Casa Editoria Imprenta Popular.
Lynch, Thomas F. 1974 The Antiquity of Man in South America. Quaternary Research 4:356-377.
Man, Edward Horace 1975 Aboriginal Inhabitants of the Andaman Islands. Delhi: Sanskaran Prakashak.
Mann, G. V., O. A. Roels, D. J. Price, and J. M. Merrill 1962 Cardiovascular Disease in African Pygmies: A Survey of the Health Status, Serum Lipids and Diet of Pygmies in Congo. Journal of chronic Diseases 15:341-371.
Medway, L. 1972 The Quaternary Mammals of Malesia: A Review. In The Quaternary Era in Malesia. P. Ashton and M. Ashton, eds. Pp. 63-72. Aberdeen: University of Aberdeen.
Meggers, B. J. 1973 Some Problems of Cultural Adaptation in Amazonia, with Emphasis on the Pre-European Period. In Tropical Forest Ecosystems in Africa and South America: A Comparative Review. B. J. Meggers, E. S. Ayensu, and D. Duckworth, eds. Pp. 311-320. Washington: Smithsonian.
Metraux, Alfred 1963a The Caingang. In The Handbook of South American Indians, Vol. 1. J. H. Steward, ed. Pp. 445-475. New York: Cooper Square Publishers. 1963b The Botocudo. In The Handbook of South American Indians, Vol. 1. J. H. Steward, ed. Pp. 531-540. New York: Cooper Square Publishers.
Metraux, Alfred, and Herbert Baldus 1963 The Guayaki. In The Handbook of South American Indians, Vol. 1. J. H. Steward, ed. Pp. 435-444. New York: Cooper Square Publishers.
Milton, Katherine 1984 Protein and Carbohydrate Resources of the Maku Indians of Northwestern Amazonia. American Anthropologist 86(1):7-27.
Moreau, R. E. 1963 Vicissitudes of the African Biomes in the Late Pleistocene. Proceedings of the Zoological Society of London 141:395-421.
Murdock, George P. 1967 Ethnographic Atlas. Pittsburgh: University of Pittsburgh Press. 1968 The Current Status of the World's Hunting and Gathering Peoples. In Man the Hunter. R. B. Lee and I. Devore, eds. Pp. 13-20. Chicago: Aldine.
Murty, M. L. K. 1981 Hunter-gatherer Ecosystem and Archaeological Patterns of Subsistence Behaviour on the South-east Coast of India: An Ethnographic Model. World Archaeology 13(1):47-58.
Needham, Rodney 1972 Penan. In Ethnic Groups of Insular Southeast Asia, Vol. 1. F. LeBar, ed. Pp. 176-180. New Haven: HRAF Press.
Nix, H., and J. Kalma 1972 Climate as a Dominant Control in the Biogeography of Northern Australia and New Guinea. In Bridge and Barrier: The Natural and Cultural History of Torres Strait. D. Walker, ed. Pp. 61-92. Canberra: Australian National University Press.
Ohtsuka, R. 1977 The Sago Eaters: An Ecological Discussion with Special Reference to the Oriomo Papuans. In Sunda and Sahul. J. Allen, J. Golson, and R. Jones, eds. Pp. 465-492. New York: Academic Press.
Pandit, T. N. 1976 The Original Inhabitants of the Andaman and Nicobar Islands. Yojana 20:1-16.
Peterson, J. T. 1978 Hunter-Gatherer/Farmer Exchange. American Anthropologist 80:335-351. 1981 Game, Farming, and Interethnic Relations in Northeastern Luzon, Philippines. Human Ecology 9:1-23.
Phillipson, David W. 1985 African Archaeology. Cambridge: Cambridge University Press.
Powell, J. 1976 Ethnobotany. In New Guinea Vegetation. K. Paijmans, ed. Pp. 106-183. Canberra: Australian National University Press. 1977 Plants, Man and Environment in the Island of New Guinea. In The Melanesian Environment. J. Winslow, ed. Pp. 11-20. Canberra: Australian National University Press.
Prance, Ghillian T., ed. 1982 Biological Diversification in the Tropics. New York: Columbia University Press.
Pratibha, Debbi 1979 Scarps of Chotanagpur: A Study in Physiography and Human Geography. Ranchi: Subodh Granthamala Karyalaya.
Radcliffe-Brown, A. R. 1933 The Andaman Islanders. Cambridge: Cambridge University Press.
Rambo, A. T. 1985 Primitive Polluters: Semang Impact on the Malaysian Tropical Rain Forest Ecosystem. Ann Arbor: University of Michigan Press.
Rao, K. P., and C. G. K. Ramanujam 1982 Palynology of the Quilon Beds of Kerala State, South India. Palaeobotanist 30(1):68-100.
Rhoads, J. 1980 Through a Glass Darkly: Present and Past Land-use Systems of Papuan Sago-palm Users. Ph.D. dissertation, Australian National University.
Richards, P. W. 1973 Africa, the "Odd Man Out." In Tropical Forest Ecosystems in Africa and South America: A Comparative Review. B. J. Meggers, E. S. Ayensu, and D. Duckworth, eds. Pp. 21-26. Washington: Smithsonian Institution Press.
Ricklefs, R. E. 1973 Ecology. Portland: Chiron Press.
Sankalia, H. D. 1974 The Prehistory and Protohistory of India and Pakistan. Poona: Deccan College Postgraduate and Research Institute. 1977 The Prehistory of India. New Delhi: Mushiram Manoharlal Publishers.
Saxon, D. 1982 Linguistic Evidence for the Eastward Spread of the Ubangian Peoples. In The Archaeological and Linguistic Reconstruction of African History. C. Ehret and M. Posnansky, eds. Pp. 66-77. Berkeley: University of California Press.
Schebesta, Paul 1936 My Pygmy and Negro Hosts. London: Hutchinson.
Schrire, Carmel 1984 Past and Present in Hunter Gatherer Studies. Orlando: Academic Press.
Schweinfurth, G. 1874 The Heart of Africa, Vol. 2. New York: Harper & Brothers.
Seligmann, Charles, and Brenda Z. Seligmann 1911 The Veddas. Cambridge: Cambridge University Press.
Sharma, M. J. 1982 The Upper Paleolithic Culture of India. Delhi: Agam Kala Prakashan.
Sharma, G. R., and J. D. Clark, eds. 1983 Paleoenvironments and Prehistory in the Middle Son Valley, Madhya Pradesh, North-Central India. Delhi: Abinash Prakashan.
Snarskis, Michael J. 1979 Turrialba: A Paleo-Indian Quarry and Workshop Site in Eastern Costa Rica. American Antiquity 44(1):125-138.
Speth, J., and K. Spielman 1983 Energy Source, Protein Metabolism, and Hunter-Gatherer Subsistence Strategies. Journal of Anthropological Archaeology 2:1-31.
Sponsel, Leslie E. 1986 Amazon Ecology and Adaptation. Annual Review of Anthropology 15:67-97.
Stark, N. 1971 Nutrient Cycling, II. Nutrient Distribution in Amazonian Vegetation. Tropical Ecology 12:117-201.
Stearman, Allyn MacLean 1984 The Yuqui Connection: Another Look at Siriono Deculturation. American Anthropologist 86:630-650.
Steward, Julian 1963 Culture Areas of the Tropical Forests. In The Handbook of South American Indians, Vol. 3. J. H. Steward, ed. Pp. 883-899. New York: Cooper Square Publishers.
Talbot, M. R. 1984 Preliminary Results from Sediment Cores from Lake Bosumtwi, Ghana. Palaeoecology of Africa and the Surrounding Islands 16:173-192.
Tanno, T. 1981 Plant Utilization of the Mbuti Pygmies with Special Reference to Their Material Culture and Use of Wild Vegetable Foods. Kyoto University. African Study Monographs 1:1-51.
Tindale, Norman B. 1974 Aboriginal Tribes of Australia. Los Angeles: University of California Press.
Toledo, Victor M. 1983 Pleistocene Changes of Vegetation in Tropical Mexico. In Biological Diversification in the Tropics. G. T. Prance, ed. Pp. 93-111. New York: Columbia University Press.
Tsukada, M. 1966 Late Pleistocene Vegetation and Climate in Taiwan (Formosa). Proceedings of the National Academy of the Sciences 55:543-548. 1967 Vegetation in Subtropical Formosa during the Pleistocene and the Holocene. Palaeogeography, Palaeoclimatology, Palaeoecology 3:49-64.
Turnbull, Colin M. 1961 The Forest People: A Study of the Pygmies of the Congo. New York: Simon & Schuster. 1965a The Mbuti Pygmies: An Ethnographic Survey. Anthropological Papers of the American Museum of Natural History 50(3):139-282. 1965b Wayward Servants: The Two Worlds of the African Pygmies. Garden City: Natural History Press. 1968 The Importance of Flux in Two Hunting Societies. In Man the Hunter. R. B. Lee and Irven DeVore, eds. Pp. 132-137. Chicago: Aldine.
van Noten, F. 1977 Excavations at Matupi Cave. Antiquity 51:35-45. 1982 The Archaeology of Central Africa. Austria: Graz.
van Zinderen Bakker, E. M. 1982 African Palaeoclimates 18,000 yrs B.P. Palaeoecology of Africa and the Surrounding Islands 15:77-100.
van Zinderen Bakker, E. M., and J. H. Mercer 1986 Major Late Cainozoic Climatic Events and Paleoenvironmental Changes in Africa Viewed in a Worldwide Context. Palaeogeography, Palaeoclimatology, Palaeoecology 56:217-235.
Vanzolini, Paulo E. 1973 Paleoclimates, Relief, and Species Multiplication in Equatorial Forests. In Tropical Forest Ecosystems in Africa and South America: A Comparative Review. B. J. Meggers, E. S. Ayensu, and D. Duckworth, eds. Pp. 225-258. Washington: Smithsonian Institution Press.
Verstappen, H. Th. 1975 On Palaeoclimates and Landform Development in Malesia. In Modern Quaternary Research in Southeast Asia. G. J. Bartstra and W. A. Casparie, eds. Pp. 3-35. Rotterdam: A. A. Balkema.
Walker, D. 1970 The Changing Vegetation of the Montane Tropics. Search 1:217-221.
Walker, D., ed. 1972 Bridge and Barrier: The Natural and Cultural History of Torres Strait. Canberra: Australian National University Press.
Weber, R. L. 1985 Current Research: The Amazon, Eastern Brazil, and the Orinoco. American Antiquity 50(1):175-179.
White, J. Peter 1972 Ol Tumbuna. Archaeological Investigations in the Eastern Central Highlands, Papua New Guinea. Canberra: Terra Australis 2.
White, J. Peter, and J. O'Connell 1982 A Prehistory of Australia, New Guinea and Sahul. Sydney: Academic Press.
Whitten, Richard G. 1979 Comments on the Theory of Holocene Refugia in the Culture History of Amazonia. American Antiquity 44(2):238-251.
Wickramapathirana, Edmund 1984 The Stone Age of South India and Sri Lanka: A Critical Review. Oxford: B A R. International Series 228.
Wilbert, Johannes 1959 Zur Soziologie der Parajano. Zeitschrift fur Ethnologie 84(1):81-87.
Williams, B. J. 1974 A Model of Band Society. Washington: Memoir of the Society for American Archaeology. 1987 Rates of Evolution: Is There a Limit? Evolution 41:226-232.